viernes, 4 de julio de 2008

El tejido de la vida

Primero que todo dar las gracias a meneame.net por recomendar la entrada del "Síndrome del funcionario/butanero" a todos sus visitantes.

Seguimos con la temática histológica y qué mejor que hablar del tejido de la vida: el ovario. Muchos de vosotros pensaréis: - Sí vale, ¿pero y el espermatozoide qué?

Es cierto que el espermatozoide participa en la reproducción aportando el material genético para conformar un nuevo organismo diploide, además de los centriolos necesarios para la segunda división mitótica, pero nada más. Sin embargo el óvulo contiene todos los RNAs necesarios para el que se desenvolupe el nuevo organismo, sobre todo en la etapa de inicio. Los RNAs del oocito se activan en el momento de la fecundación transcribiendo los factores de transcripción necesarios para el inicio del desarrollo. Por tanto, en última instancia el inicio del crecimiento del zigoto no se da gracias al DNA de este, si no al de la madre, al del tejido germinativo de la madre. Además las mitocondrias que contienen cada una de las células de nuestro cuerpo (con algunas excepciones, como el cristalino) provienen de la madre, y no del padre. Por tanto el verdadero tejido de la vida es el ovario femenino, donde se forman los oocitos.

En este tejido podemos distinguir oocitos en diferentes etapas de desarrollo. Los más pequeños son los folículos primordiales, precursores de los siguientes y situados en la periferia del ovario, foliculos primarios, secundarios y finalmente el folículo de Graaf, que es el más maduro de todos.

Como en todos los tejidos hay diferentes células que lo componen, tenemos los propios oocitos, las células de la granulosa, de la teca interna y externa, así como tejido conjuntivo que rodea a las estructuras que contienen los oocitos conocidas como folículos o el propio tejido germinal situado en la periferia del ovario que da origen a los folículos primordiales en posteriores etapas de maduración.

Me hubiese gustado extenderme más con la explicación de los detalles y poner los nombres en las estructuras que aparecen en cada una de las fotos que he sacado hoy con el microscopio, pero ya sabéis que estoy en el sprint final y que hago un gran esfuerzo para actualizar todos los días, por eso os voy a poner las imágenes del ovario de rata para que las podáis ver y preguntarme si hay algo que os llama la atención, siento que la calidad de las fotos no sea muy buena pero es que uso una cámara convencional y me las apaño como puedo:

jueves, 3 de julio de 2008

El intestino delgado

Ante la petición de mi compañero Emperador (que sepas que este es mi regalo de cumpleaños para los próximos 150 años, si es que sobrevives, y mi regalo de boda) he decidido hacer una entrada especial acerca de esta parte del tubo digestivo.

Todo el tubo digestivo tiene el mismo patrón en cuanto estructura histológica se refiere, desde el esófago hasta el intestino grueso, pasando por el estómago (el estómago se considera una parte del tubo digestivo ensanchada). En este caso he obtenido fotografías del yeyuno, que es la porción media del intestino delgado (es la única que tengo en mi colección de preparaciones).
La función básica del intestino delgado es la absorción de los nutrientes del  quilo (producto resultante de la digestión después de pasar por el estómago y recibir la bilis y los jugos pancreáticos). Las células que recubren el intestino son las encargadas de transportar desde la luz los nutrientes como los hidratos de carbono, proteínas y lípidos hacia el medio intracelular, y lo hacen mediante proteínas transportadoras de membrana, no creáis que el quilo pasa directamente a la sangre por los huecos que quedan entre las células. Esto es totalmente falso ya que entrarían multitud de agentes patógenos y la absorción no estaría regulada de ninguna manera. Además hay unas estructuras celulares entre las células prismáticas que componen el epitelio llamadas "tight junctions" que forman una barrera aislando el medio intracelular del extracelular, por tanto la absorción se va a producir tan sólo a través de estas células prismáticas.
Para optimizar esta absorción el organismo a optimizado al máximo el espacio disponible para tener la máxima superficie de absorción y encontramos diversos niveles de pliegues. En un primer nivel tenemos los pliegues propios del intestino, después el propio epitelio en el intestino está replegado, a otro nivel se encuentran  las vellosidades intestinales y finalmente las propias células tienen en la parte apical microvellosidades que solo son visibles en microscopía electrónica.
Las fotos que os voy a colgar son de microscopía óptica:
PIC_0164
Foto realizada a partir de un corte del yeyuno a 400 aumentos
En la imagen de la parte superior se observan las vellosidades intestinales. Cada una de las células que recubren estas vellosidades con morfología prismática, mayoritariamente, son células absorbentes, pero tenemos algunas con el citoplasma más claro llamadas caliciformes. El núcleo de la microvellosidad está formado por tejido conjuntivo, con fibrocitos y plasmocitos con acción inmunitaria.
Estos pliegues son muy profundos y a 400 aumentos no se pueden apreciar bien por eso muestro otra imagen tomada a 100 aumentos:
PIC_0166 Imagen tomada a 100 aumentos desde el microscopio óptico del corte del yeyuno
Como se puede contemplar en la imagen el sistema de pliegues es bastante completo. Finalmente la capa circular externa por debajo de las vellosidades corresponde a músculo liso que va a contribuir en la circulación del quilo en su camino hacia el intestino grueso.

Histología, estudio de los tejidos que constituyen los seres vivos

Después de unos días hablando de reproducción animal cambiaremos un poco de tema, y pasaremos a la histología, organografía...La razón de seguir una temática concreta es que voy a razón de exámenes, ayer hice el de reproducción animal y el próximo, y último es el de Histología/Organografía. Después de los exámenes los temas serán alternos, supongo...y hablaré más de Biología molecular y Bioquímica.


Pienso que todo el mundo debería tener la oportunidad de ver, aunque sea en foto, preparaciones histológicas. Es fascinante ver la unidad mínima de la vida, las pequeñas piezas que construyen nuestro cuerpo, cada célula es una unidad vida independiente,se nutre, se relaciona, se reproduce...Ojo! esto no quiere decir que una célula de nuestro cuerpo pueda vivir sin problemas por si sola ya que somos individuos pluricelulares cuyas células están especializadas para trabajar en conjunto y se necesitan unas a otras para poder proseguir en el camino de la vida.


Como decía, ver un corte histológico es ver los elementos que nos componen. A simple vista puedes ver un riñón, pero si ves la preparación histológica de un riñón entiendes su funcionamiento y ves todas las piezas que lo forman. Al igual que el juego de construcción Lego el cuerpo humano posee diferentes piezas, diferentes células, que combinadas entre sí forman los tejidos, y que a su vez combinados entre sí van a formar estructuras y órganos.


Para ver un ejemplo de lo que estoy diciendo veremos una foto que he realizado con el microscopio a 400 aumentos del corte de una arteriola.

Dibujo

Lo que nos puede parecer un simple tubo homogéneo está compuesto por diferentes piezas agrupadas por capas con funciones totalmente distintas. Con el 1 tenemos marcada una célula endotelial. Este tipo celular recubre la superficie de todas los vasos sanguíneos de nuestros cuerpos, desde los de más calibre como las arterias o las venas principales, hasta los capilares.

Todo el sector circular que queda a la izquierda, donde se ven multitud de esferas irregulares es la luz de la arteria, lugar por donde circula la sangre, y esas esferas irregulares son los glóbulos rojos. En el número 2 aparece la lámina elástica, una capa de fibras elásticas que forman parte del tejido conjuntivo, presentan una forma sinuosa muy característica y su función es permitir la expansión del capilar durante el pulso cardíaco para que no se rompan por el incremento de presión. Con el 3 tenemos la capa de células musculares lisas, cada vesícula violeta que vemos en esta capa corresponde a un núcleo de este músculo liso, su función es contraerse y distendirse para mantener la circulación de la sangre. Finalmente en el 4 tenemos la túnica adventicia compuesta por tejido conjuntivo, y cuyas células predominantes son los fibrocitos, esta última capa es la que entra en contacto con los órganos adyacentes por los que pasa la arteria.


Un simple tubo, que tiene función conductora, tiene una estructura bastante compleja. Imaginad el resto de órganos de nuestro cuerpo...

miércoles, 2 de julio de 2008

Learning how to live together: genomic insights into prokariote animal simbiosis

Cuando escuchamos la palabra simbiosis pensamos en dos organismos, dos seres vivos, que comparten un ecosistema, o un mismo nicho ecológico y cuya presencia facilita la obtención de beneficios por ambas partes, es decir se obtiene un beneficio mutuo.


Si hablamos de simbiosis entre eucariotas y procariotas la definición propuesta en la parte superior se queda un poco corta. Los organismos procariotas tienen la capacidad de vivir en todas partes, incluso en los ambientes más extremo, como es el caso de 300px-Thermus_aquaticus Thermus aquaticus, capaz de sobrevivir en las fumarolas volcánicas y soportar temperaturas de hasta 90ºC, recordemos que la polimerasa de este procariota es la que se utiliza en los laboratorios de molecular y genética para la PCR (reacción de polimerización en cadena) y que nos permite amplificar el DNA mediante termocicladores, aumentando la temperatura para separar las hebras sin que la polimerasa se desnaturalice.
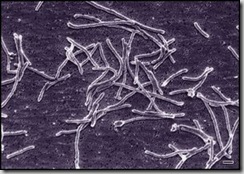
 

Por tanto no es difícil aceptar que si “casi” son poseedoras del “don de la ubicuidad” sean capaces de vivir dentro de otras células eucariotas y endosimbiontes de organismos superiores en la escala evolutiva.


El ejemplo de endosimbiosis más conocido es el que propuso Lynn Margulis a final de los años 60 en la teoría endosimbióntica. En ella proponía que el origen de las mitocondria y del cloroplasto era endosimbionte. Una simbiosis entre un procariota capaz de oxidar la materia orgánica, en el caso de la mitocondria, o de realizar la fotofosforilación oxidativa en el caso del cloroplasto. Esta simbiosis se produjo hace tantos millones de años que las relaciones entre ambas son tan estrechas que de alguna manera se ha “camuflado” cómo eran estas células antes de la simbiosis, pero no podemos dejar de lado muchas de las características que tienen en común las mitocondrias y los cloroplastos con otros procariotas, como es una doble membrana, DNA libre de núcleo e incluso se especula la posibilidad de que el origen de la bomba ATPasa situada en la matriz mitocondrial sea algún tipo de vestigio de los flagelos del procariota pre-simbionte.


Este es el ejemplo más conocido, pero nos sorprendería saber la cantidad de seres vivos que poseen simbiontes que permiten el aporte de nutrientes que el organismo no puede obtener por sí mismo de forma natural.


Los simbiontes se pueden clasificar, según la edad evolutiva estimada de la relación con el hospedador y el grado de dependencia que pueden tener, en endosimbiontes primarios y endosimbiontes secundarios.


Los primarios son fruto de una asociación antigua y especializada, entre 30 y 270 millones de años, con lo cual muchas de las relaciones simbióticas de los insectos son anteriores a la aparición de algunos grupos hoy dominantes. En estos casos como el periodo de asociación muy largo y la evolución de ambas especies ha sido dependiente aparecen numerosas alteraciones tanto en el genoma como en la estructura poblacional. Estos simbiontes son transmitidos generación tras generación por la vía vertical que casi siempre está mediada por la vía materna, tal y como ocurre con las mitocondrias en el caso de los eucariotas, que siempre son de origen materno, en nuestro caso las mitocondrias que poseen las células de nuestro cuerpo son de origen exclusivamente materno, ya que las mitocondrias situadas en el cuello del espermatozoide son degradadas y no forman parte del zigoto.


Un ejemplo de este tipo de asociación es el de γ-proteobacteria, que vive en asociación obligada con insectos aprovisionándolos de aminoácidos esenciales, vitaminas y cofactores que están ausentes en su dieta, además contribuyen al reciclaje del nitrógeno y los provisionan de factores metabólicos que son requeridos para la supervivencia y para la fertilidad. La mayoría de estos simbiontes son heterótrofos pero también se han encontrado quimicolitoautotróficos en el océano del genero Ruthia magnífica, oxida azufre y proporciona energía a su hospedador C. magnífica.


Los simbiontes secundarios, que a diferencia de los primarios, no son indispensables para la supervivencia del hospedador ni están restringidos a órganos especializados. Además estos pueden colonizar nuevas especies mediante la transmisión horizontal, es decir mediante el típico proceso infeccioso donde el simbionte se adquiere desde el ambiente externo.

En muchas ocasiones diversos endosimbiontes conviven en un mismo hospedador, y establecen complejas relaciones entre ellos. Uno de estos casos es el de la bacteria Buchnera aphidicola y Serratia symbiotica, que coexisten en el bacterioma (órgano formado por células que contienen las bacterias endosimbiontes) del áfido Cinara cedri, en este caso se ha visto que S. symbiotica por el tiempo acabará sustituyendo a B.aphidicola. Este ejemplo es uno de los posibles finales que puede tener la convivencia de dos endosimbiontes, que uno predomine sobre el otro y este desaparezca.


La otra opción es la que ocurre con Sulcia muelleri y Homalodisca coagulata, en el hospedador Baumania cicadellinicola. En este caso el análisis genómico ha demostrado que hay una serie de complementaciones metabólicas entre ambos simbiontes, de alguna manera se distribuyen el trabajo para aportar al hospedador los nutrientes que necesiten, ellos a cambio obtienen el beneficio de estar en un entorno estable como es el interior de un organismo, y no en un entorno cambiante y agresivo como es el medio externo.


Estas simbiosis dan lugar a que haya un conjunto de genes redundantes en las bacterias endosimbiontes. Es decir, genes que se repiten en el hospedador y la bacteria, o entre las bacterias y por ello va a darse una serie de cambios genómicos en la evolución del endosimbionte a partir de esta relación mutualista. La mayor parte de veces va a haber una reducción del genoma para optimizar al máximo los recursos, no tendría sentido poseer dos juegos de genes para metabolizar la glucosa, y por tanto el conjunto de genes dedicado a esta acción en la bacteria se pierde, además se van a acumular las mutaciones ya que la transmisión es por vía vertical. No todas las bacterias que posee el individuo parental van a pasar a la F1 por tanto se generan continuos cuellos de botella favoreciendo un flujo arbitrario genético de generación en generación. Otra característica es que en esta reducción del genoma se produce un incremento de la cantidad de adeninas y timinas en el genoma, a causa de la perdida de los genes de los mecanismos de reparación, recordemos que las bases nitrogenadas poseen. Recordemos que en ocasiones se pueden dar emparejamientos erróneos a causa de las formas tautoméricas de las bases nitrogenadas. Podemos tener emparejamientos C*-A o T-G*que si no son corregidos por los mecanismos pertinentes, por ejemplo MutL, MutS y MutH (etc) porque se han visto afectados por la reducción de genoma, pasaran de generación en generación, y esto explicaría el aumento de contenido en A-T del genoma. Se ha propuesto que la sobreexpresión de GroEl en B.aphidicola es causa del aumento de proteínas con dificultades para plegarse a causa de estas mutaciones AT. GroEl es una carabina molecular que interviene en el plegamiento postraduccional de aquellas proteínas que se han quedado “atascadas” en una conformación que no puede ser resuelta de forma espontánea y requiere de un apoyo para poder plegrase.

Imágen de la chaperonina GroEl


Para entender las reducciones que se han producido en el genoma es necesario comparar las secuencias de los simbiontes con el genoma de bacterias evolutivamente relacionadas y que sean de vida libre. Este análisis de comparación podría realizarse por ejemplo mediante chips de DNA. Podríamos coger el genoma de la bacteria de vida libre, extenderlo en un chip de DNA y posteriormente extraer el DNA de la bacteria endosimbionte y marcarlo radiactivamente. Una vez marcado hibridaríamos este DNA con el chip y cuantificaríamos la cantidad de radiactividad que ha incorporado, averiguando así la cantidad de genoma reducido. Después podrían secuenciarse esos genes marcados o averiguar el producto de esos genes para saber que funciones se han degradado en las bacterias a causa de la endosimbiosis. Lo que si se conoce es que la pedida masiva de genes ocurre cuando se establece una simbiosis de tipo obligado.


En un proceso de endosimbiosis ambos organismos deben adaptarse mutuamente y como ya hemos dicho por parte de la bacteria se pierden aquellos genes que ya no son necesarios en el nuevo entorno, pero sí que debe retener un conjunto de genes que le permita la supervivencia en el hospedador. Sin embargo todavía no se entiende a qué nivel genético puede afectar al hospedador la presencia de un endosimbionte, pero sí que se sabe que el hospedador se adapta al endosimbionte proporcionándole unas células específicas para que estas se sitúen y una modificación del sistema inmunitario para que no detecte estas bacterias como agentes patógenos. Además se ha dado a entender que estos bacteriocitos (células que contienen a las bacterias simbiontes) son un tipo más de célula del organismo hospedador y que no dependen de la presencia de las bacterias, ya que al eliminar mediante antibióticos los simbiontes se pudo ver que los bacteriocitos se conservaban y además se mantenían, por tanto evolutivamente los bacteriocitos representan un nuevo tipo celular.


Para analizar los mecanismos de respuesta inmunitaria se utilizan bacterias que todavía estén en fases tempranas de endosimbiosis como es el caso de los endosimbiontes del género Sitophilus, que expresa un peptidoglicano de reconocimiento homólogo a otra proteína de D.melanogaster, de esta manera el sistema inmunitario reconoce a la bacteria como propia.


Por tanto la simbiosis no es algo estático, sino dinámico. Los simbiontes y los hospedadores van adaptándose mutuamente entre sí y van cambiando progresivo, en la mayoría de casos en los que convive un endosimbionte primario, y otro secundario el secundario acabará sustituyendo el primario y se adaptarán el uno al otro sufriendo una evolución conjunta. Además el campo de la biología sintética se ha interesado mucho en los aspectos de la endosimbiosis por el interés que despierta el llamado genoma mínimo, ya que en muchos casos los endosimbiontes reducen su genoma hasta el punto que sólo conservan los genes que benefician de alguna manera al hospedador y los genes mínimos para la supervivencia de este. Una vez conocido este genoma mínimo se puede construir un cromosoma artificial, y por tanto un organismo, a partir del endosimbionte además de determinar qué genes son los necesarios para la perpetuación de este podemos averiguar que regiones del genoma actúan como reguladores y con qué grado porque un gen no incluye tan sólo el promotor basal, las secuencias codificantes y la región terminadora, incluye todos aquellos elementos que marcan su correcto funcionamiento, desde los genes que codifican las proteínas reguladoras, a los enhancers e incluso los RNAs pequeños. El estudio de este genoma mínimo nos va a permitir averiguar con un grado mayor de precisión el significado concreto de gen.

martes, 1 de julio de 2008

-¿Vasectomía? - No, gracias

Para concluir estos días dedicados a la reproducción voy a exponer algunos de los aspectos de un tipo de anticoncepción como es la vasectomía. Este tipo de anticoncepción es de tipo quirúrgico ya que para poder efectuarse hay que pasar por quirófano.

Muchos de vosotros sabréis en qué consiste, pero de todas formas voy a resumiros por encima la intervención.

Se realiza en el macho y consiste en interrumpir el vaso deferente mediante un corte. El vaso deferente comunica los tubos seminíferos situados en los testículos con la uretra por donde se va a efectuar la salida del semen. Hay un vaso deferente por testículo, de manera que se ha de interrumpir cada uno de estos conductosvasectomia . Es un método bastante efectivo, pero hay que acudir a revisiones periódicas por si se forma por anastomosis algún tipo de "puente" y sí se permita el paso de los espermatozoides. Hay que dejar claro que el individuo seguirá eyaculando con total normalidad, la única diferencia es que el semen no contendrá espermatozoides. Hay que tener en cuenta que los espermatozoides van acompañados por otras sustancias que se generan en diferentes glándulas (Copwer, próstata...) cuyos conductos no han sido interrumpidos y siguen desembocando en la uretra, por tanto a simple vista el eyaculado es normal.

No obstante se trata de una operación totalmente irreversible, ya que es un conducto muy fino, hay zonas en que el epitelio es una monocapa de células, y es imposible de unir sin que colapse. A pesar de esto siempre se pueden extraer espermatozoides realizando una biopsia porque en "teoría" nuestros testículos van a seguir produciendo espermatozoides, tan sólo se ha cortado un conducto y nuestros niveles hormonales siguen siendo normales.

Bien, nos hemos hecho la vasectomía...¿Qué pasa con los espermatozoides que seguimos produciendo? El sistema reproductor masculino es un sistema ductal, de conductos, no obstante si uno de los conductos principales ha sido cerrado y la producción de espermatozoides sigue, es fácil de deducir que se va a producir un incremento de la presión en todo el sistema de conductos seminíferos, es cierto que la producción de espermatozoides disminuirá porque las células de Sértoli son capaces de regular la producción, pero esta no cesará del todo y se seguirá produciendo un aumento de presión. ¿En qué puede desembocar esto? En una destrucción y reabsorción de los tejidos, se ha comprobado que la vasectomía en ratones provoca la destrucción de los tubos seminíferos. La verdad es que hay muy poca información sobre los efectos de este método, y me pregunto si lo que pasa en las ratas ocurrirá en los humanos también, así que por muy bonita que nos la dibujen yo, al igual que mi profesor de reproducción animal, responderemos de la misma manera: - ¿Vasectomía? No, gracias.

---------------------------------------------------------------

Este post va dedicado a mi compañero de habitación Emperador, que hoy ha terminado los exámenes y seguramente ya estará de vuelta en casita, gracias por los momentos frikis que hemos llegado a compartir en los largos días de estudio.