martes, 15 de julio de 2008

Plegamiento de proteínas (IV)

Ayer estuvimos hablando de la estructura de GroEl y de los detalles de cada una de sus subunidades. Su funcionamiento no tiene ningún desperdicio.


El mecanismo funcional de GroEL y de GroES se podría resumir en cinco pasos:


1) Los residuos hidrofóbicos que recubren la cavidad de cada anillo de GroEL funcionan como un imán que une y reconoce todos los residuos hidrofóbicos que se encuentran a su alrededor y los une. Esta es una buena técnica para seleccionar las proteínas que se van a unir, porque si una proteína tiene los residuos hidrofóbicos en la parte externa quiere decir que no esta plegada correctamente ya que esta situación es desfavorable energéticamente. En estos casos GroEL tendría afinidad por este tipo de proteínas y se uniría a ellas.

image 2) El ATP se une a su sitio de unión en el dominio ecuatorial de monómero de GroEL. La unión desencadena cambios conformacionales en la chaperonina. Además existe cooperatividad positiva entre los monómeros de un mismo anillo y cooperatividad negativa entre las subunidades de los dos anillos, de manera que una vez que la molécula de ATP se une a un monómero de los anillos y desencadena la unión inmediata de moléculas de ATP a las otras seis subunidades del mismo anillo, se impide la unión de ATP a las siete subunidades del otro anillo. Como hemos descrito en la parte de estructura, la unión del ATP produce un cambio conformacional que permite la unión de la cochaperonina GroES.


3) La unión del ATP provoca una apertura de la cavidad dentro del anillo y, por otra parte, GroES sella la cavidad donde se va a producir el fenómeno más importante, el plegamiento de la proteína. Los residuos hidrofóbicos, que hasta ahora interaccionaban con el polipéptido, lo hacen ahora con el lazo desordenado de GroES. El cambio conformacional producido por la cochaperonina hace que todos los residuos hidrofóbicos y cargados, que se exponían en la superficie interior de la cavidad, cambien de posición y dirección y queden expuestos residuos hidrofílicos. Una vez el polipéptido ha sido encerrado en estas condiciones, libre de interacciones no deseadas que acechan en el exterior, y en una cavidad mucho más grande que en el momento de unión, a causa de los cambios conformacionales, el polipéptido ya puede intentar plegarse por sí mismo, utilizando la información codificada en su secuencia (estructura primaria).


4) Las moléculas de ATP unidas a todas las subunidades del anillo se hidrolizan. La hidrólisis del nucleótido, además de relajar la unión de GroES a GroEL en ese anillo, permite que otra molécula de GroES se una al segundo anillo, formando un complejo simétrico.


5) La formación del complejo simétrico no es muy estable, porque la unión de GroES al segundo anillo induce la liberación de la cochaperonina del primer anillo y la salida al exterior del polipéptido encerrado. El primer anillo está ya dispuesto para recibir otro polipéptido desnaturalizado que se encuentre en su entorno.


Si leemos detenidamente el mecanismo, podemos compararlo con un motor de dos tiempos, con un motor de dos cilindros (los dos anillos) en el que cada uno de ellos se encuentra en cada momento en posiciones diferentes del ciclo.

Mientras un anillo está liberando la cochaperonina y por tanto el polipéptido encerrado, el otro se está uniendo otra cochaperonina.

En este paralelismo con un motor de dos cilindros el ATP funcionaría como combustible, gracias al cual el ciclo se mantiene en funcionamiento indefinidamente.

Si observamos la siguiente gráfica vemos que el porcentaje de plegamiento de una proteína desnaturalizada aumenta al máximo en un medio en que esta presente GroEl + GroEs + ATP. Se comprueba que tan solo la presencia de estos tres factores permite el plegamiento de la proteína al 100%.

image 

¿No os parece curioso que otras proteínas ayuden a plegarse a otras proteínas? Esta es una muestra de su elevado nivel de importancia en cualquier ser vivo.

lunes, 14 de julio de 2008

Plegamiento de proteínas (III)

Después de un día de merecido descanso dominical seguimos donde lo dejamos.

Hablamos de las chaperonas, explicamos brevemente su ciclo y dejamos el tema de las chaperoninas para hoy.

Recordemos que las chaperoninas hace referencia a un tipo de chaperonas que aportan una cavidad, un espacio físico, en donde se puede producir el plegamiento de la proteína, aislada del entorno tan agreste y salvaje como es el citoplasma celular.

Son estructuras protéicas (y perdonen que me desvíe de la objetividad) IMPRESIONANTES, auténticas obras de nano-arquitectura creadas por la propia naturaleza, y si no fijaros en estas imágenes de la chaperonina GroEl:


Si pasáis el cursor por encima de la presentación una lente os ampliará el contenido.

Como veis esta estructura multiprotéica aporta un espacio en donde la proteína se puede plegar fuera del alcance de otras moléculas que haya "pululando" por el citosol. Hay que destacar que en las fotos aparece el complejo GroEl -GroEs. GroEs es la cochaperonina de GroEl, pero la estructura real de GroEl es la de la figura (a) y (b) que aparece en la foto con fondo blanco (recordad que podéis parar la presentación con el pause situado en la pare inferior izquierda)


Es una gran complejo multiprotéico pero compuesto por 14 subunidades, y todas ellas poseen un dominio ecuatorial, donde encontramos la mayoría de los aminoácidos responsables de la interacción con las subunidades del mismo anillo y todos los responsables de la interacción con las subunidades del otro anillo. Reside en ese dominio la zona de unión a una molécula de ATP que es decisiva para el mantenimiento del ciclo del funcionamiento de la chaperonina, el ATP se une a la tirosina que ocupa la posición 447. En la base de este dominio encontramos residuos cargados negativamente y residuos cargados positivamente que van a participar en la unión de los dos anillos que conforman el complejo GroEL.


Encontramos un segundo dominio, el apical, que forma el techo de la cavidad del anillo. En la boca de la cavidad se alojan una serie de aminoácidos hidrófobos que estarán implicados en la unión de la proteína que va a ser plegada, así como con la unión del GroES. Finalmente el tercer dominio pone en contacto el dominio ecuatorial con el apical y a modo de bisagra que permite los movimientos que se producen durante el ciclo de funcionamiento.

La siguiente imagen muestra la descripción de los tres dominios existentes en GroEL:

 image

El conjunto de estas  subunidades forman el complejo que antes hemos visto en las imágenes de arriba. ¿Pero cómo funciona? Mejor lo dejamos para otro día ¿no?

domingo, 13 de julio de 2008

Plegamiento de proteínas (II)

Bueno como os comentaba ayer los experimentos de Anfinsen se demostraron "in vitro", en un medio donde tan solo se encontraban en el medio las proteínas, ello facilitó el plegamiento de las proteínas por si solas, mediante la propia secuencia de aminoácidos, pero el citosol está lleno de moléculas que pueden interferir en el plegamiento y dar lugar a plegamientos incorrectos.

En las células hay una serie de proteínas que contribuyen al plegamiento. Estas proteínas son las carabinas moleculares.

Las carabinas moleculares se unen a la proteína naciente para evitar plegamientos incorrectos e interacciones con otras proteínas del medio intracelular.

Existen diferentes tipos de carabinas moleculares, pero básicamente se pueden clasificar en dos grupos, chaperonas y chaperoninas. A grandes rasgos y sin entrar en detalles, para no agobiar a los lectores del blog, se diferencian unas de otras en que las chaperoninas proporcionan una cavidad explícita para el plegamiento de las proteínas, mientras que las chaperonas no.

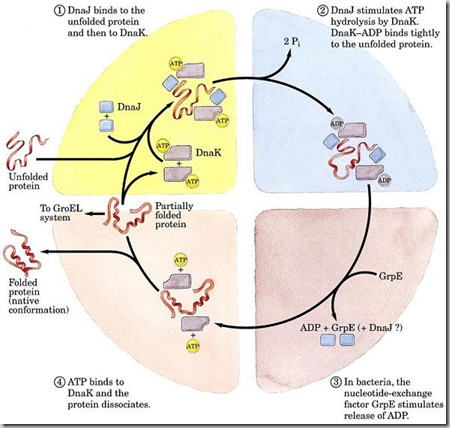
Ambas proteínas detectan  las proteínas mal plegadas, ¿cómo? muy fácil, la mayoría de las proteínas mal plegadas, por no decir todas, tienen resíduos hidrofóbicos hacia el citosol, cuando esto es termodinámicamente desfavorable en un medio altamente polar cimo es el citosol. Cuando detectan estos resíduos hidrofóbicos y se unen a ellos proporcionándoles tiempo para que se plieguen de forma correcta. Esto lo hacen sin gasto de ATP directo, sí que es cierto que lo usan pero es para realizar cambios conformacionales y facilitar el plegamiento. En el caso de las chaperoninas funcionan con el siguiente ciclo:

chaperonas

Imagen extraída de Principios de Bioquímica, LEHNINGER 4ªedición

En  este caso DnaK es la carabina molecular y DnaJ es la cochaperonina, que interviene en la hidrólisis del ATP a ADP y su intercambio de nuevo a ATP. Si después de este ciclo aún no se ha plegado se vuelve a unir otra DnaK y empieza el ciclo de nuevo hasta que esté plegada del todo.


Este es el caso de las chaperonas, pero nos falta comentar las chaperoninas, aquellas que proporcionan una cavidad para plegarse, pero esto lo dejaremos para el próximo día, así que...continuará...

sábado, 12 de julio de 2008

Plegamiento de proteínas

Raro es que todavía no haya realizado ninguna entrada acerca de este tema porque es uno de los que más me apasiona. Podría hablar días y días acerca de este tema.


Las proteínas son unas macromoléculas compuestas por aminoácidos unidos entre sí por un enlace peptídico y que adoptan una disposición espacial concreta que está íntimamente ligada para su función. Si no se alcanza esta disposición de plegamiento la proteína no va a poder ejercer su función, si se trata de un enzima difícilmente va a poder catalizarse la reacción si no adopta esta estructura.

Durante los años 50 Christian Anfinsen demostró que el plegamiento de las proteínas en una estructura determinada viene predefinida por la secuencia de aminoácidos. Sobre todo el tercer nivel de plegamiento es en el que más participan los residuos de los aminoácidos que van a definir las disposición de toda la cadena.


Está estructuración está basada entre las interacciones de diferente naturaleza que se dan entre las cadenas laterales de estos resíduos y que son de diferente naturaleza, por ejemplo encontramos enlaces de tipo covalente entre resíduos de cisteína, o interacciones electroestáticas entre aminoácidos polares (con carga negativa o positiva) e interacciones hidrofóbicas entre resíduos apolares. Las interacciones van a darse de forma que la estructura global sea termodinámicamente favorable, y por tanto en un principio el plegamiento sería espontáneo a partir de la secuencia de aminoácidos, tal y como demostró Anfinsen.

No obstante los experimentos de Anfinsen se realizaron "in-vitro" es decir en un medio extracelular. Resumiendo el experimento consistió en desnaturalizar una proteína "in-vitro", quitó los agentes desnaturalizantes y posteriormente eliminó estos agentes y observó que la proteína había adoptado de nuevo la estructura inicial.


Pero como ya he dicho esto pasa "in-vitro" pero, ¿qué pasará "in-vivo"? En el citosol hay miles de moléculas diferentes que podrían interferir en el plegamiento de las proteínas. Pensemos por un momento en la traducción, es un proceso vectorial, la proteína va sintetizándose en el ribosoma, y a medida que van apareciendo los resíduos pordrían darse interacciones inoportunas con otras moléculas. 


¿Cómo solucionan este percance las células? Próximamente....


viernes, 11 de julio de 2008

De vuelta al laboratorio

En fin, después de una época infernal de exámenes he vuelto al laboratorio donde colaboro, en el laboratorio de Genómica de levaduras del departamento de Bioquímica y Biología Molecular de la Universidad de Valencia.

Durante todo el curso no he podido asistir todo lo que hubiese querido, y ahora puedo aprovechar un par de semanas para recuperar el tiempo.


5134 En nuestro caso estamos realizando un estudio acerca de la regulación de la transcripción en eucariotas, en concreto de levaduras. En concreto estamos estudiando un conjunto de proteínas que se unen al RNA para estabilizarlo,  no se trata de un control a nivel transcripcional, es de tipo postranscripcional.


Este control permite una regulación rápida, ya que el RNA está presente en el citosol y la respuesta frente a una señal es mucho más rápida que si se tiene que transcribir el RNA. Parece ser que este mecanismo es utilizado por muchos más genes de los que se pensaban.

Los mecanismos de regulación son muy diversos y aún queda mucho por hacer, hay multitud de artículos relacionados con este aspecto y os animo a aquellos que me leáis a buscar el PubMed y páginas por el estilo este tipo de artículos.