La verdad es que estos días ando un poco liado con las clases y las prácticas, y esta semana más aún porque tengo prácticas intensivas de Bioquímica Metabólica así que no sé si podré actualizar tanto como quisiera.
Ahora es época de resfriados, viene el frío y entre otras cosas vienen las gripes, en todas sus formas y colores, los problemas de contracturas y dolores musculares…es decir que muchos de nosotros nos enfrentamos a un batallón de medicamentos que nos alivian el dolor por un lado, pero que muchas veces nos producen múltiples problemas por otro.
Uno de los principales problemas de los medicamentos es que en muchas ocasiones causan dolor de estómago, molestias y sobre todo acidez. Esta acidez está producida por el ácido gástrico que se secreta durante la digestión, no obstante ésta no empieza en el momento de comer en sí , empieza mucho antes.

El problema viene cuando muchos de los medicamentos que tomamos tienen un efecto análogo a estos estímulos y activan la bomba produciendo una hipersecreción de protones dando lugar a ese fenómeno tan molesto como es la acidez de estómago.
Por voluntad propia del médico o porque se lo pedimos encarecidamente se nos receta un reforzante de estómago que es una sustancia que inhibe esta bomba de protones.

Uno de estos inhibidores es el Omeprazole, una molécula en principio inactiva pero que en un entorno ácido como el estómago es activada y da lugar a una sulfamida que interactúa de forma covalente con los residuos de cisteína en el dominio extracelular de la bomba inhibiendo su funcionamiento, reduciendo así el ácido extra del estómago y acabando con las molestias.
Es un ejemplo más de los muchos medicamentos que se basan en la interacción específica con bombas y canales de membrana.

domingo, 15 de noviembre de 2009
Reforzante de estómago


martes, 17 de febrero de 2009
Laboratorio virtual
Hoy tenía ganas de escribir una entrada mucho más laboriosa…pero como siempre ando mal de tiempo…así que hoy voy a pasaros un link para gente que sea verdaderamente friqui de la bioquímica y de las cocinitas, es un laboratorio virtual de biología molecular en donde podéis hacer PCR, secuenciación e incluso averiguar quién es el asesino del crimen. He de decir que es una aplicación realmente sencilla pero que puede ser de gran utilidad a la hora de entender las digestiones de plásmidos e interpretar geles de agarosa…así que a pesar de ser cutre puede ser realmente útil y lo aconsejo para preparar las prácticas de bioquímica o de biología molecular. Aquí os dejo una captura de pantalla y el link:

martes, 26 de agosto de 2008
¿A qué huele...?
¿Alguna vez os habéis preguntado cómo funciona el sistema olfativo que tenemos? ¿Cómo detectamos un aroma determinado y nuestro cerebro interpreta la naturaleza de ese olor? ¿Qué mecanismos celulares participan, y cómo lo hacen?
En los humanos el área olfatoria está situada en la parte superior de las fosas nasales. En el epitelio olfatorio se incluyen diversos tipos celulares. Los más importantes son las células de sostén y las neuronas receptoras olfatorias, sin duda las más importantes.

Las neuronas receptoras olfatorias son de carácter bipolar, por un lado emerge un pequeño axón amielínico que conecta con el bulbo olfatorio. En su superficie apical la neurona hay microvellosidades denominadas cilios olfatorios que son las que van a detectar las sustancias odoríferas.
Estas sustancias odoríferas no son más que substáncias químicas, moléculas. En la decada de 1950 John Amoore dividió los olores en categorias basadas en la cualidad percibida, la estructura molecular y las clasificó en: picante, floral, almizclado, terroso, etéreo, alcanforado, mentolado, éter y putrido. Esta clasificación es totalmente empírica y además hay que añadir a esto que la cualidad de los olores puede variar con la concentración, es decir, bajas concentraciones de indol tienen un aroma floral, mientras que a altas concentraciones huele a pútrido. Además de todo esto hay que añadir que las cosas que nos rodean, la mayoría de los olores, son una mezcla de diversas sustancias odoríferas, aunque después lo identifiquemos como un sólo olor.

Pero, ¿cómo pasa esta señal química a nuestro cerebro? ¿Cuál es la maquinaria molecular?
La transducción de las señales odoríferas comienza cuando estas moléculas químicas, anteriormente comentadas, se unen a los receptores específicos de membrana de los cilios (proteínas de membrana), ya sea de forma directa o a través de proteínas en el moco llamadas proteínas fijadoras de sustáncias odoríferas. Esta asociación a los receptores activa una proteína G específica de la sustancia odorífera que activa por su parte una adenilato cliclasa, lo que conduce a la generación de AMPc. Uno de los blancos del AMPc es un canal selectivo de cationes que cuando se abre permite el influjo de Na+ y Ca2+, este influjo crea un potencial de membrana, dando lugar al impulso eléctrico con que transmiten la información las neuronas.

Una vez más governados por las leyes de la química...
miércoles, 13 de agosto de 2008
El origen de la vida
Ayer estaba haciendo zapping por la tele-basura que se emite por España cuando de repente vi en un canal autonómico, uno de esos secundarios que nadie suele ver porque se emiten repeticiones, programas de deportes...etc, un documental titulado VIDA.
Al ver el título, como buen futuro biólogo, me detuve por unos instantes para ver de que hablaban y he de decir que me quedé hasta el final, realmente me sorprendió. Normalmente los documentales que se emiten en televisión son de carácter naturalista, van dirigidos a gente que no estudia biología, y en ocasiones se dicen aberraciones de las que sólo nos damos cuenta los que estamos un poquito metidos en el tema.
 Sin embargo anoche trataron el origen de la vida de una forma muy correcta y accesible para todos, y remarcaron aspectos muy importantes como los experimentos de Miller, la selección natural, el paso de un medio anoxigénico a un medio oxigénico y el brutal impacto que esto supuso...
Todos estos conceptos, ya algunos más, que en perfecta armonía dieron lugar a un documental de divulgación bastante bueno, tan bueno que me hizo retomar algunas reflexiones que ya había tenido.
Todo lo que somos hasta ahora ha sido producto del azar, desde los primeros aminoácidos que aparecieron por aquel "caldo de cultivo" primitivo que era la tierra, pasando por LUCA (Last Universal Common Ancestor), los animales más primitivos (como los poríferos) hasta los más complejos (como los mamíferos más elevados en la escala evolutiva). Todo, absolutamente todo ha sido producto del azar. Los seres humanos somos los únicos capaces de hacer frente a ese azar, podemos hacer frente (en parte) a la selección natural, y enfermedades con las que en otras épocas no hubiésemos llegado ni al año de vida ahora se pueden paliar con medicamentos, pero recordemos que si estas enfermedades tienen el más mínimo origen genético serán transmitidas y por tanto estos genes disminuirán la calidad de los genes de la población en conjunto.
La variabilidad genética en humanos es prácticamente nula, y esto puede tener ventajas a la hora de sincronizarse entre sí, de cooperar, de reproducirse...pero también desventajas, ya que el más mínimo cambio al que no pudiésemos hacer frente provocaría fuertes estragos en la población. Hasta el momento hemos modelado el entorno en el que vivimos a nuestro antojo, cuando tenemos frío nos resguardamos, tenemos calefacción...cuando hace calor también...tenemos supermercados, cultivos...tenemos de momento la subsistencia garantizada...pero imaginemos un cambio en el ambiente al que no pudiésemos hacer frente... en ese momento las posibilidades de supervivencia de nuestra especie estarían muy mermadas, no habría posibilidad alguna de adaptación y lo más seguro es que nos viésemos abocados a la extinción.
Cuanto más pienso en lo que nos rodea, más fascinante me parece lo que hemos llegado ha ser...no me cansaré de repetir esta frase: "La vida es fascinante"
viernes, 1 de agosto de 2008
Transferencia de DNA a membranas
Bueno primero que nada disculparme ante mis lectores por la ausencia de entradas durante estos días, pero hay una serie de acontecimientos que no me permiten atender el blog tan bien como quisiese.
En muchas investigaciones en Biología Molecular se utiliza la hibridación de DNA o de RNA para averiguar qué genes se expresan ante determinadas condiciones fisiológicas.
¿Pero cómo se consigue esto? Una de las opciones es utilizar un método de transferencia a membrana o Southern ( en el caso de DNA). Se extrae el DNA del organismo, se trata con enzimas de restricción y posteriormente se corre en un gel de agarosa. Una vez tratado con enzimas de restricción el DNA ha quedado cortado y separado por fragmentos en el gel. Pero una vez tenemos el DNA cortado necesitamos un soporte en dónde realizar la hibridación con el DNA de interés para saber si está presente en el genoma del organismo o no.
Este soporte es una membrana de nitrocelulosa, y la transferencia es mucho más sencilla de lo que parece. Se coloca la membrana encima del gel y por debajo del gel un tampón salino. Encima de la membrana de nitrocelulosa se coloca papel absorvente. El tampón va a ascender hacia el papel absorvente y va a arrastrar el DNA desde el gel hasta la membrana en que quedará retenido en la misma posición que en el gel. Una vez tenemos el DNA en este soporte ya podemos seguir con los experimentos que necesitemos.

martes, 29 de julio de 2008
Una auténtica central energética en los seres vivos
En algunas entradas anteriores ya os he nombrado al ATP como moneda de intercambio de energía en los seres vivos, he explicado su naturaleza...Pero, ¿De dónde proviene este ATP? ¿Cómo se obtiene este ATP de los alimentos?
Durante la metabolización de los nutrientes hay reacciones que permiten la transferencia de grupos fosfatos al ADP y convertirlo en ATP. Pero gran parte del ATP se obtiene gracias a la cadena de transporte electrónico, y aquí es donde me gustaría centrarme y contaros algo muy fascinante.
Un ejemplo de obtención de energía eléctrica en el caso de los humanos son las centrales térmicas. En estas centrales se realiza la combustión de carbón o petróleo para calentar agua y crear vapor que posteriormente hará girar unas turbinas conectadas a unos generadores que convertirán la energía térmica en mecánica y posteriormente en electricidad que llegará a cada uno de los enchufes de nuestras casas. En este caso la electricidad sería la moneda de intercanvio de energía común, como el caso de ATP en los organismos.
¿Por tanto poseen los organismos algún tipo de "central térmica "que transforme la energía que se obtiene de los alimentos en ATP? En efecto, las células eucariotas poseen varias "centrales térmicas" en su interior, y el concepto de funcionamiento es algo similar.
En el caso de las células estas centrales se llaman mitocondrias, y como las centrales poseen algo similar a los generadores, a esas turbinas de rotación impulsadas a vapor, el complejo ATP-sintasa, sólo que en lugar de vapor usa como impulsor de movimiento un gradiente de protones.
La ATP sintasa está situada en la membrana interna de las mitocondrias (también existen en los cloroplastos pero esto mejor para otra entrada)
Esta compuesta por dos complejos, el complejo F0 que es el complejo transmembrana y el complejo F1 situado mirando hacia la matriz mitocondrial.

Cada complejo esta formado por diferentes subunidades protéicas, en el complejo transmembrana se encuentra el canal para los protones, mientras que en el complejo F1 encontramos 5 tipos de subunidades a, b, g, d y e en donde se encuentran los tres sitios catalíticos, en concreto en las tres subunidades beta, en donde va a producirse la reacción ADP + Pi >>>>>>> ATP.
El mecanismo de funcionamiento es como el de un auténtico generador. Existe una diferencia de gradiente de protones entre el espacio intermembrana de la mitocondria y la matriz mitocondrial. Este gradiente provoca el paso de protones a través del complejo F0 de la ATP sintasa. Este paso de los protones provoca un giro de las subunidades c de la porción F0, este giro va a ser transmitido al eje gamma. Este eje interacciona con las subunidades catalíticas de la porción F1, produciendo cambios conformacionales en las subunidades proteicas disminuyendo la energía de activación de la reacción que transforma el ADP a ATP. Este mecanismo de la catálisis rotacional fue propuesto por Paul Boyer que fue Premio Nobel en 1997 gracias a este descubrimiento.
Por su puesto que este mecanismo no es tan simple como lo explico aquí, es mucho más complejo y tiene muchos más detalles, pero no creo que sea conveniente describir aquí todos esos detalles porque no llegarían a todos mis lectores, que no proceden todos del campo de la biología.
Aquí os dejo con un vídeo que permite entender mejor lo que he comentado en la entrada:
lunes, 28 de julio de 2008
Neurotransmisores
Yo no sé si a vosotros, mis queridos lectores, os pasa como a mí. Cuando me detengo a pensar en la complejidad que debe existir en nuestro cerebro para poder realizar las acciones que realizamos día a día, para poder hacer lo que estoy haciendo yo ahora, razonar, y transmitir mis pensamientos por escrito a través de movimiento mediante órdenes efectuadas a neuronas motoras que activan los músculos de mis dedos para dirigirlos a las teclas correctas de mi ordenador, pero al mismo tiempo mis ojos leen lo que escribo y procesan las ondas que emite la pantalla y la transforman en información capaz de entender...
Pensemos por un momento en la estructura histológica y citológica de nuestro cerebro. Básicamente distinguimos dos grupos de células, las neuronas, encargadas de generar y transmitir el impulso nervioso a otras neuronas u órganos y las células de la glía, encargadas de mantener las complejas redes neuronales. Por ejemplo en la neuroglía encontramos los oligodendrocitos, que forman la vaina de mielina, o por ejemplo los astrocitos encargados de formar la barrera hematoencefálica.

Este pequeño conjunto de células relacionadas entre sí pueden dirigir nuestro comportamiento, nuestros sentimientos...nuestro propio ser.
La ciencia desconoce mucho acerca del funcionamiento de este tejido tan completo, muchos de los estudios se centran en estudiar la unidad funcional básica de todo sistema nervioso, la neurona, para posteriormente entender el conjunto.
Uno de los aspectos conocidos del funcionamiento de las neuronas es la forma de transmitir la información de una neurona a otra neurona, los llamados neurotransmisores.
Estos neurotransmisores participan en las llamadas sinápsis químicas, y tal y como indica en el proceso en que participan son sustancias químicas de diferente tipo de naturaleza que resumiendo emergen de la membrana del axón de una neurona y penetran en la membrana de las dendrita de la neurona siguiente en donde se sitúan los receptores de los neurotransmisores.

Encontramos neurotransmisores de naturalezas distintas, pero se clasifican básicamente en dos grandes grupos, los neuropéptidos, que cómo no podría ser de otra manera,son proteínas de 3 a 336 aminoácidos. Y los neurotransmisores de molécula pequeña, que son aminoácidos individuales como glutamato, GABA...Dentro de este grupo también encontramos las aminas biógenas, como la dopamina, noradrenalina, serotonina...
Muchos de estos neurotransmisores derivan de metabolitos procedentes del metabolismo de la glucosa, de ahí la importancia de los hidratos de carbono en nuestra dieta, y esto explica también que la base metabólica del tejido neuronal sea mayoritariamente la glucosa, ya que se necesitan precursores para la formación de neurotransmisores y permitir así el correcto funcionamiento del cerebro (¿Quién dijo que estudiando no se queman calorías?) Por supuesto cada neurotransmisor tiene su propio receptor y un grupo de funciones determinadas, pero no creo que este sea el momento ni el lugar de entrar en detalles, aunque no descarto una posible entrada del funcionamiento de algún neurotransmisor para que veáis la complejidad en el funcionamiento.

Poco a poco la ciencia conseguirá desvelar los secretos más inospitos de nuestro cerebro y desvelar la naturaleza de nuestro ser, eso que nosotros llamamos alma...
viernes, 25 de julio de 2008
¿Cómo se determina la estructura de una proteína?
Seguro que muchos de vosotros habéis visto fotos de estructuras tridimensionales de proteínas. Con sus hélices alfa y sus giros B. Estas estructuras representan la estructura auténtica de la proteína, ¿pero jamás os habéis preguntado como consiguen desvelar esta estructura?
Uno de los métodos más utilizados es la difracción de rayos X, el espaciado entre átomos de una red cristalina puede determinarse midiendo la localización y la intensidad de las manchas producidas en una película fotográfica por un haz de rayos X de longitud de una onda conocida al ser difractado por los electrones de los átomos.
Los métodos de difracción de rayos X también permiten estudiar el espaciado de diferentes tipos de átomos en moléculas orgánicas complejas, y entre estas moléculas se encuentran las proteínas.

Una vez obtenido el cristal se coloca en un haz de rayos X, entre la fuente de rayos X y el detector, y se genera un modelo regular de señales de difracción denominadas reflexiones. Las señales o puntos se generan por el haz de rayos X difractado y cada uno de los átomos de la molécula contribuye a cada uno de los puntos.
El patrón global de puntos va a dar lugar a la construcción de una mapa de densidad electrónica de la proteína mediante una herramienta matemática transformada de Fourier.
Después de procesar los datos con un computador se obtienen imágenes como éstas:


miércoles, 16 de julio de 2008
¿De dónde obtienen la energía los seres vivos?
Durante las últimas entradas ha aparecido un término, ATP, que para muchos de los que seguís este blog, si estáis un poco metidos en el campo de la biología sabréis que ATP significa (adenosin trifosfato). Simplemente es una molécula de adenina con tres fosfatos unidos en 5' a través de la ribosa.

Las células obtienen la energía mediante reacciones químicas, la rotura de un enlace químico proporciona energía libre que posibilita la ejecución de otras reacciones posteriores, eso sí, actualmente está totalmente claro que los procesos biosintéticos no violan las leyes de la termodinámica.
Hay reacciones que sí que son favorables termodinamicamente y hay otras que necesitan un aporte extra de energía, por ejemplo, una acumulación de glucosa, de por sí no da lugar a glucógenos (que es un polímero de la glucosa) o un acumulo de ácidos nucleicos no da lugar a una hebra de DNA, se necesita energía extra para que se dé la reacción y esta energía la va a aportar la molécula de intercanvio de energía por excelencia en la célula, el ATP, del que antes hablábamos.
Las moléculas que ceden energía son termodinámicamente inestables. Hay una gran variación en la cantidad de energía libre que poseen las moléculas específicas. Esto es así porque las moléculas que se utilizan como moneda de intercambio de energía no poseen todos los enlaces covalentes con la misma energía de enlace. Como por ejemplo el enlace entre oxígeno e hidrógeno es bastante más fuerte que el enlace entre hidrógeno e hidrógeno, u oxígeno y oxígeno. Así, la formación de un enlace O-H a expensas de O-O o H-H liberará energía. Las consideraciones energéticas, por lo tanto, nos indican que una mezcla de oxígeno e hidrógeno de concentración suficiente se transformará en agua.
Otro aspecto interesante es que una molécula posee una energía libre mayor si se une por enlaces covalentes débiles que si lo hace por enlaces fuertes. Esta idea es casi paradójica a primera vista porque significa que cuando más fuerte es el enlace, menor es la cantidad de energía libre que puede ceder. No obstante esto cobra sentido cuando nos damos cuenta de que un átomo que formó un enlace muy fuerte ya perdió una gran cantidad de energía a la hora de formar el enlace, las mejores moléculas combustibles son las que contienen enlaces covalentes débiles y, por tanto, desde el punto de vista termodinámico son inestables.
Por ejemplo la glucosa es una molécula combustible excelente porque hay una gran disminución de energía libre cuando el oxígeno la oxida para generar dióxido de carbono y oxígeno.
La clave para que estas moléculas "ricoenergéticas" sean útiles deben tener otra característica que las hace útiles y es que para que se rompan estos enlaces se necesita mucha energía de activación, y esta energía de activación la van a proporcionar las proteínas, en concreto los enzimas, que rebajan la energía de activación de la reacción haciéndola termodinamicamente favorable. Esto evita que las moléculas rompan el enlace y liberen energía en cualquier situación y lo hagan cuando sea necesario y no espontáneamente.

martes, 15 de julio de 2008
Plegamiento de proteínas (IV)
Ayer estuvimos hablando de la estructura de GroEl y de los detalles de cada una de sus subunidades. Su funcionamiento no tiene ningún desperdicio.
El mecanismo funcional de GroEL y de GroES se podría resumir en cinco pasos:
1) Los residuos hidrofóbicos que recubren la cavidad de cada anillo de GroEL funcionan como un imán que une y reconoce todos los residuos hidrofóbicos que se encuentran a su alrededor y los une. Esta es una buena técnica para seleccionar las proteínas que se van a unir, porque si una proteína tiene los residuos hidrofóbicos en la parte externa quiere decir que no esta plegada correctamente ya que esta situación es desfavorable energéticamente. En estos casos GroEL tendría afinidad por este tipo de proteínas y se uniría a ellas.
 2) El ATP se une a su sitio de unión en el dominio ecuatorial de monómero de GroEL. La unión desencadena cambios conformacionales en la chaperonina. Además existe cooperatividad positiva entre los monómeros de un mismo anillo y cooperatividad negativa entre las subunidades de los dos anillos, de manera que una vez que la molécula de ATP se une a un monómero de los anillos y desencadena la unión inmediata de moléculas de ATP a las otras seis subunidades del mismo anillo, se impide la unión de ATP a las siete subunidades del otro anillo. Como hemos descrito en la parte de estructura, la unión del ATP produce un cambio conformacional que permite la unión de la cochaperonina GroES.
3) La unión del ATP provoca una apertura de la cavidad dentro del anillo y, por otra parte, GroES sella la cavidad donde se va a producir el fenómeno más importante, el plegamiento de la proteína. Los residuos hidrofóbicos, que hasta ahora interaccionaban con el polipéptido, lo hacen ahora con el lazo desordenado de GroES. El cambio conformacional producido por la cochaperonina hace que todos los residuos hidrofóbicos y cargados, que se exponían en la superficie interior de la cavidad, cambien de posición y dirección y queden expuestos residuos hidrofílicos. Una vez el polipéptido ha sido encerrado en estas condiciones, libre de interacciones no deseadas que acechan en el exterior, y en una cavidad mucho más grande que en el momento de unión, a causa de los cambios conformacionales, el polipéptido ya puede intentar plegarse por sí mismo, utilizando la información codificada en su secuencia (estructura primaria).
4) Las moléculas de ATP unidas a todas las subunidades del anillo se hidrolizan. La hidrólisis del nucleótido, además de relajar la unión de GroES a GroEL en ese anillo, permite que otra molécula de GroES se una al segundo anillo, formando un complejo simétrico.
5) La formación del complejo simétrico no es muy estable, porque la unión de GroES al segundo anillo induce la liberación de la cochaperonina del primer anillo y la salida al exterior del polipéptido encerrado. El primer anillo está ya dispuesto para recibir otro polipéptido desnaturalizado que se encuentre en su entorno.
Si leemos detenidamente el mecanismo, podemos compararlo con un motor de dos tiempos, con un motor de dos cilindros (los dos anillos) en el que cada uno de ellos se encuentra en cada momento en posiciones diferentes del ciclo.
Mientras un anillo está liberando la cochaperonina y por tanto el polipéptido encerrado, el otro se está uniendo otra cochaperonina.
En este paralelismo con un motor de dos cilindros el ATP funcionaría como combustible, gracias al cual el ciclo se mantiene en funcionamiento indefinidamente.
Si observamos la siguiente gráfica vemos que el porcentaje de plegamiento de una proteína desnaturalizada aumenta al máximo en un medio en que esta presente GroEl + GroEs + ATP. Se comprueba que tan solo la presencia de estos tres factores permite el plegamiento de la proteína al 100%.

¿No os parece curioso que otras proteínas ayuden a plegarse a otras proteínas? Esta es una muestra de su elevado nivel de importancia en cualquier ser vivo.
lunes, 14 de julio de 2008
Plegamiento de proteínas (III)
Después de un día de merecido descanso dominical seguimos donde lo dejamos.
Hablamos de las chaperonas, explicamos brevemente su ciclo y dejamos el tema de las chaperoninas para hoy.
Recordemos que las chaperoninas hace referencia a un tipo de chaperonas que aportan una cavidad, un espacio físico, en donde se puede producir el plegamiento de la proteína, aislada del entorno tan agreste y salvaje como es el citoplasma celular.
Son estructuras protéicas (y perdonen que me desvíe de la objetividad) IMPRESIONANTES, auténticas obras de nano-arquitectura creadas por la propia naturaleza, y si no fijaros en estas imágenes de la chaperonina GroEl:
Si pasáis el cursor por encima de la presentación una lente os ampliará el contenido.
Como veis esta estructura multiprotéica aporta un espacio en donde la proteína se puede plegar fuera del alcance de otras moléculas que haya "pululando" por el citosol. Hay que destacar que en las fotos aparece el complejo GroEl -GroEs. GroEs es la cochaperonina de GroEl, pero la estructura real de GroEl es la de la figura (a) y (b) que aparece en la foto con fondo blanco (recordad que podéis parar la presentación con el pause situado en la pare inferior izquierda)
Es una gran complejo multiprotéico pero compuesto por 14 subunidades, y todas ellas poseen un dominio ecuatorial, donde encontramos la mayoría de los aminoácidos responsables de la interacción con las subunidades del mismo anillo y todos los responsables de la interacción con las subunidades del otro anillo. Reside en ese dominio la zona de unión a una molécula de ATP que es decisiva para el mantenimiento del ciclo del funcionamiento de la chaperonina, el ATP se une a la tirosina que ocupa la posición 447. En la base de este dominio encontramos residuos cargados negativamente y residuos cargados positivamente que van a participar en la unión de los dos anillos que conforman el complejo GroEL.
Encontramos un segundo dominio, el apical, que forma el techo de la cavidad del anillo. En la boca de la cavidad se alojan una serie de aminoácidos hidrófobos que estarán implicados en la unión de la proteína que va a ser plegada, así como con la unión del GroES. Finalmente el tercer dominio pone en contacto el dominio ecuatorial con el apical y a modo de bisagra que permite los movimientos que se producen durante el ciclo de funcionamiento.
La siguiente imagen muestra la descripción de los tres dominios existentes en GroEL:

El conjunto de estas subunidades forman el complejo que antes hemos visto en las imágenes de arriba. ¿Pero cómo funciona? Mejor lo dejamos para otro día ¿no?
domingo, 13 de julio de 2008
Plegamiento de proteínas (II)
Bueno como os comentaba ayer los experimentos de Anfinsen se demostraron "in vitro", en un medio donde tan solo se encontraban en el medio las proteínas, ello facilitó el plegamiento de las proteínas por si solas, mediante la propia secuencia de aminoácidos, pero el citosol está lleno de moléculas que pueden interferir en el plegamiento y dar lugar a plegamientos incorrectos.
En las células hay una serie de proteínas que contribuyen al plegamiento. Estas proteínas son las carabinas moleculares.
Las carabinas moleculares se unen a la proteína naciente para evitar plegamientos incorrectos e interacciones con otras proteínas del medio intracelular.
Existen diferentes tipos de carabinas moleculares, pero básicamente se pueden clasificar en dos grupos, chaperonas y chaperoninas. A grandes rasgos y sin entrar en detalles, para no agobiar a los lectores del blog, se diferencian unas de otras en que las chaperoninas proporcionan una cavidad explícita para el plegamiento de las proteínas, mientras que las chaperonas no.
Ambas proteínas detectan las proteínas mal plegadas, ¿cómo? muy fácil, la mayoría de las proteínas mal plegadas, por no decir todas, tienen resíduos hidrofóbicos hacia el citosol, cuando esto es termodinámicamente desfavorable en un medio altamente polar cimo es el citosol. Cuando detectan estos resíduos hidrofóbicos y se unen a ellos proporcionándoles tiempo para que se plieguen de forma correcta. Esto lo hacen sin gasto de ATP directo, sí que es cierto que lo usan pero es para realizar cambios conformacionales y facilitar el plegamiento. En el caso de las chaperoninas funcionan con el siguiente ciclo:
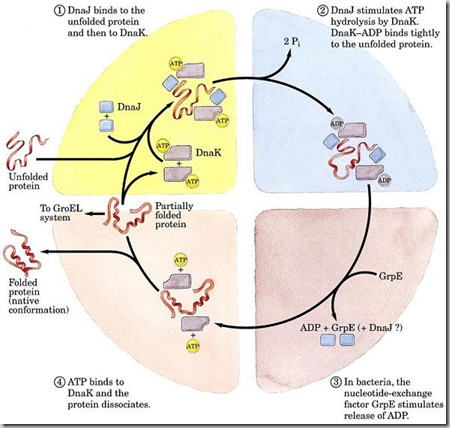
Imagen extraída de Principios de Bioquímica, LEHNINGER 4ªedición

En este caso DnaK es la carabina molecular y DnaJ es la cochaperonina, que interviene en la hidrólisis del ATP a ADP y su intercambio de nuevo a ATP. Si después de este ciclo aún no se ha plegado se vuelve a unir otra DnaK y empieza el ciclo de nuevo hasta que esté plegada del todo.
Este es el caso de las chaperonas, pero nos falta comentar las chaperoninas, aquellas que proporcionan una cavidad para plegarse, pero esto lo dejaremos para el próximo día, así que...continuará...
sábado, 12 de julio de 2008
Plegamiento de proteínas
Raro es que todavía no haya realizado ninguna entrada acerca de este tema porque es uno de los que más me apasiona. Podría hablar días y días acerca de este tema.
Las proteínas son unas macromoléculas compuestas por aminoácidos unidos entre sí por un enlace peptídico y que adoptan una disposición espacial concreta que está íntimamente ligada para su función. Si no se alcanza esta disposición de plegamiento la proteína no va a poder ejercer su función, si se trata de un enzima difícilmente va a poder catalizarse la reacción si no adopta esta estructura.

Está estructuración está basada entre las interacciones de diferente naturaleza que se dan entre las cadenas laterales de estos resíduos y que son de diferente naturaleza, por ejemplo encontramos enlaces de tipo covalente entre resíduos de cisteína, o interacciones electroestáticas entre aminoácidos polares (con carga negativa o positiva) e interacciones hidrofóbicas entre resíduos apolares. Las interacciones van a darse de forma que la estructura global sea termodinámicamente favorable, y por tanto en un principio el plegamiento sería espontáneo a partir de la secuencia de aminoácidos, tal y como demostró Anfinsen.
No obstante los experimentos de Anfinsen se realizaron "in-vitro" es decir en un medio extracelular. Resumiendo el experimento consistió en desnaturalizar una proteína "in-vitro", quitó los agentes desnaturalizantes y posteriormente eliminó estos agentes y observó que la proteína había adoptado de nuevo la estructura inicial.
Pero como ya he dicho esto pasa "in-vitro" pero, ¿qué pasará "in-vivo"? En el citosol hay miles de moléculas diferentes que podrían interferir en el plegamiento de las proteínas. Pensemos por un momento en la traducción, es un proceso vectorial, la proteína va sintetizándose en el ribosoma, y a medida que van apareciendo los resíduos pordrían darse interacciones inoportunas con otras moléculas.
¿Cómo solucionan este percance las células? Próximamente....
viernes, 20 de junio de 2008
Un ejemplo de reciclaje en nuestras células
Todos conocemos muy bien que la célula transcribe gran cantidad de proteínas cuyas funciones son diversas, desde estructurales a enzimáticas…etc. Muchas de ellas acaban perdiendo su funcionalidad porque son sometidas a diferentes formas de estrés…
Estas proteínas dejan de ser funcionales y por tanto son residuos que deben ser eliminados, hay que tener en cuenta que proteínas mal plegadas pueden formar agregados que pueden provocar grandes enfermedades, como es el caso de la acumulación de placas amiloidales (agregados de proteínas mal plegadas) en el tejido neuronal causando la enfermedad del Alzheimer.De la destrucción de las proteínas “defectuosas” se encarga el proteosoma. Este proteosoma consta de un cilindro cuya parte interior es hueca donde podemos distinguir dos partes principales: el cilindro y las dos cubiertas.
El cilindro central está formado por varias subunidades proteicas que se ensamblan en una columna de cuatro anillos heptaméricos. Algunos de estos anillos son proteasas (enzimas que cortan las proteinas en trozos más chiquitines) cuyos centros activos (lugar donde estan las cadenas laterales proteicas encargadas de catalizar la reacción) están situados en la cara interior del cilindro. La otra parte de los proteosomas, las cubiertas, incluyen alrededor de 6 proteínas que hidrolizan el ATP (moneda de intercambio de energía en la célula).
Los proteosomas, a diferencia de las proteasas que cortan la cadena polipeptídica una sola vez antes de disociarse, no se liberan del sustrato, la proteína, hasta que la convierte completamente en pequeños péptidos (unidades más pequeñas que forma la proteina). Las cubiertas actúan a modo de “puertas” que deben identificar de alguna manera las proteínas a destruir, para no destruir proteínas que son funcionales.
Por tanto más que el orgánulo en sí lo más importante es el marcaje de las proteínas pendientes a ser destruidas, pero esto lo dejamos para el próximo capítulo. Como siempre digo esto es un muy breve resumen de los que podemos encontrar en internet o los libros…y como no en el “Alberts”. En este último podemos encontrarlo en las páginas 358-359.
Podríamos decir que los proteosomas realizan una función antagonista a la de las carabinas moleculares, unas guían las proteínas al correcto plegamiento, a la “vida”, mientras que los proteosomas guían las proteínas a su destrucción, a su “muerte”. Los pequeños péptidos en que son transformadas las proteínas son degradados del todo a aminoácidos y finalmente serán reutilizados de nuevo en la síntesis de nuevas proteínas.