martes, 22 de julio de 2008

Mecanismo de la vida

El objetivo de cualquier organismo es crecer, y llega un punto en que crecer no  es posible y la única forma de crecer, de perpetuar sus genes es la reproducción.


En el caso de las células la reproducción consiste en la bipartición, y previa bipartición tiene que haber una duplicación del DNA para que las dos células hijas posean la misma cantidad y el mismo DNA que la célula de procedencia (exceptuando la meiosis en donde sí que hay recombinación), de esta manera es posible perpetuar los genes.

No hace falta ser un lumbreras para entender que la duplicación del DNA sea lo más perfecta posible para que no se produzcan errores y perpetuar así con la mayor fidelidad posible los genes.

De esta tarea tan minuciosa se encarga la DNA polimerasa, que yo consideraría como el mecanismo de la vida.

Este enzima se encarga de catalizar la síntesis de DNA. A diferencia de otros enzimas que tienen un sitio activo con una función concreta la DNA polimerasa utiliza un sólo sitio de unión para catalizar la adición de cualquiera de los cuatro desoxiribonucleósidos trifosfato. Esto se consigue porque el centro activo de la DNA pol aprovecha la similitud geométrica casi idéntica de los pares de bases.

El centro activo del enzima es muy exigente topológicamente más que químicamente, sólo cuando se forma un par de bases correcto está el OH 3' del cebador y el fosfato alfa del nucleósido trifosfato en la posición concreta para que se produzca la reacción. Si no se alinean correctamente no se produce el ataque nucleofílico y no se forma el enlace fosfodiéster. La tasa de error es tremendamente baja, de alrededor de 10^-8. ¿Cómo lo consiguen y cómo catalizan esta reacción? Lo dejaremos para el próximo día...

lunes, 21 de julio de 2008

Neurohistología

Después del descanso dominical sigo deleitándoos (o no) con mis entradas. Y esta vez voy a contaros en el nuevo camino que he emprendido hoy.


Como os conté estoy en el departamento de Bioquímica y Biología Molecular, y hoy emprendo un nuevo camino en el campo de la Neurohistología, sin abandonar la Biología Molecular por supuesto.


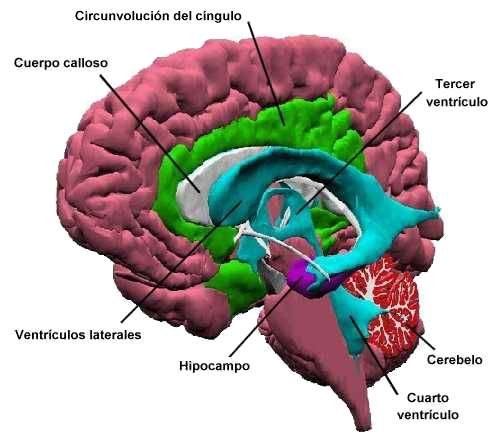
Nuestro organismo modelo es Podarcis hispanica la típica lagartija de campo. Se ha demostrado que hay homología entre el córtex cerebral de las lagartijas, en concreto la capa plexiforme y el hipocampo de los mamíferos, en cuanto a su estructura citológica, desde el punto de vista químico, a nivel de conectividad, ontogénesis y crecimiento postnatal.


Se está colaborando con el Hospital la Fé de Valencia para estudiar los efectos del alcohol en ciertas neuronas del hipocampo. Y hasta aquí puedo contaros...

sábado, 19 de julio de 2008

Adicción!

causas_ppal[1]En muchas ocasiones me he preguntado qué es lo que provoca que la gente siga fumando o bebiendo cuando la mayoría de veces aquello a los que se es adicto no le gusta a nadie. Por ejemplo, la primera cerveza no es para nada agradable, o el primer cigarrillo, ¿a quién le gusta tragarse humo? a nadie, sin embargo la gente sigue fumando y crea una dependencia al tabaco. Esto con respecto a las drogas socialmente "bien vistas" (por mi parte sinceramente no). Si pasamos al campo de las drogas duras como la cocaína, el hachís, las drogas sintéticas...la adicción se lleva al extremo.


Pero, ¿qué provoca esta adicción? La adicción es un transtorno persistente de la función encefálica en la cuál se desarrolla un consumo compulsivo de drogas a pesar de las serias consecuencias para el individuo afectado. Además este comportamiento no es exclusivo de los humanos, se puede demostrar en animales de laboratorio.


Por ejemplo la nicotina es un estimulante del sistema nervioso central. El consumo de nicotina produce cierto grado de euforia, relajación y finalmente adicción. Según se cree la nicotina produce efectos sobre nAChR (receptor colirgénico nicotínico). Son canales catiónicos no selectivos que generan respuestas postsinápticas excitadoras.


Cómo se genera la adicción es algo más complejo porque también intervienen factores psicológicos que van a combinarse con los factores neurológicos. Pero es evidente que se crea una dependencia que llega a provocar fuertes transtornos comportamentales en las personas que lo padece. ¿Hasta qué punto puede uno controlar el consumo de estas sustancias? ¿Realmente podemos tener control?

jueves, 17 de julio de 2008

Testículos de rata

Ya en otra entrada os hablé de cómo se podía medir una estructura histológica a través de una foto de microscopía óptica, hoy vamos a hablar de algo parecido pero utilizando otro método para averiguar la medida.


El otro día estaba observado unos cortes del testículo de la rata, y me llamó mucho la atención que el diámetro de los tubos seminíferos era más o menos constantes, casi todos tenían un diámetro parecido. ¿Pero cuál era su diámetro real? Me puse manos a la obra e hice fotos de diferentes zonas del corte a 40 y a 100 aumentos (x4, x10). Y en lugar de utilizar una escala milimétrica para comparar los segmentos como hice la última vez decidí utilizar un programa informático llamado ImageJ 1.41f: Es totalmente gratuito y está disponible para todos los S.O.


Este programa, entre otras muchas aplicaciones, permite definir los parámetros utilizados en el microscopio, es decir, el número de aumentos utilizados, así como seleccionar el zoom utilizado en la cámara de fotos. En mi caso una simple cámara digital me permitió sacar estas fotos ayer:


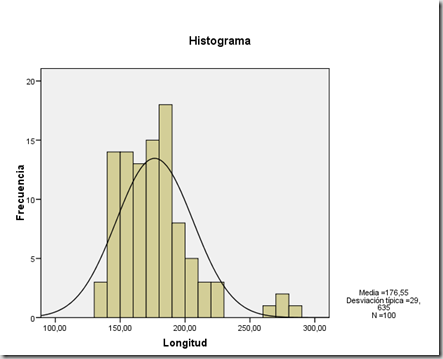
En total 6 fotos a partir de las cuales he realizado las medidas, en total 100 medidas, para tener un muestreo aceptable. No obstante hay que tener en cuenta que las medidas se han realizado en un corte de testículo de un solo ratón, y que por tanto para que la medida media obtenida pudiese representar el estándar deberíamos analizar diferentes cortes y de diferentes ratones que hayan vivido en las mismas condiciones. No obstante es una aproximación ya que el resultado obtenido no es ni mucho menos contradictorio con lo que hay publicado en las bibliografías que he podido consultar.


Los datos están en micras (10^-6 m), aquí aparecen en una tabla todas las medidas realizadas y a continuación los datos estadísticos de dichas medidas tratadas mediante el software de estadística SPSS 14.0:


281,29 197,54 197,54 275,30 185,04 141,33 141,48 158,16 194,52 159,22 158,30 181,19 181,77 183,39 177,63 187,05 167,30 158,51 139,33 181,10 140,76 175,52 148,09 216,89 150,73 163,03 137,72 158,93 160,93 140,70 162,33 184,68 173,05 211,00 179,72 143,94 181,05 158,93 182,14 182,71 193,28 148,63 278,78 157,70 190,81 190,55 208,72 150,68 151,68 186,97 173,08 174,46 172,50 180,73 180,19 160,93 178,39 160,98 172,77 146,69 178,72 140,83 174,65 144,48 161,00 188,06 154,92 164,45 164,11 140,25 184,57 140,59 166,23 182,04 162,85 143,49 166,14 157,02 263,48 208,74 174,07 226,39 209,44 153,80 201,03 186,54 220,32 211,27 184,09 191,36 161,81 179,50 174,41 152,65 199,07 135,84 202,95  177,58   140,02  228,03


Estadísticos diámetro de los túbulos
N    Válidos  100
Perdidos  1
Media       176,5515
Error típ. de la media  2,96346
Mediana  174,4350
Desv. típ.  29,63461
Varianza       
878,210
Asimetría       1,440
Error típ. de asimetría     ,241
Curtosis 3,006
Error típ. de curtosis    ,478
Rango 145,45
Mínimo     135,84


image
   Como vemos la media obtenida es de 176,55 micras, en la bibliografía dice que el diámetro de los túbulos seminíferos de rata es de unas 200 micras, por tanto parece ser que no nos hemos alejado demasiado.


Aquí tenéis otro ejemplo de como tratar los datos que nos proporcionan unas simples fotografías de microscopía óptica, eso sí para que los datos fuesen fiables, estadísticamente deberíamos medir el diámetro de diferentes individuos y comparar medias mediante nuevas fórmulas estadísticas.

miércoles, 16 de julio de 2008

¿De dónde obtienen la energía los seres vivos?

Durante las últimas entradas ha aparecido un término, ATP, que para muchos de los que seguís este blog, si estáis un poco metidos en el campo de la biología sabréis que ATP significa (adenosin trifosfato). Simplemente es una molécula de adenina con tres fosfatos unidos en 5' a través de la ribosa.


Las células obtienen la energía mediante reacciones químicas, la rotura de un enlace químico proporciona energía libre que posibilita la ejecución de otras reacciones posteriores, eso sí, actualmente está totalmente claro que los procesos biosintéticos no violan las leyes de la termodinámica.

Hay reacciones que sí que son favorables termodinamicamente y hay otras que necesitan un aporte extra de energía, por ejemplo, una acumulación de glucosa, de por sí no da lugar a glucógenos (que es un polímero de la glucosa) o un acumulo de ácidos nucleicos no da lugar a una hebra de DNA, se necesita energía extra para que se dé la reacción y esta energía la va a aportar la molécula de intercanvio de energía por excelencia en la célula, el ATP, del que antes hablábamos.

Las moléculas que ceden energía son termodinámicamente inestables. Hay una gran variación en la cantidad de energía libre que poseen las moléculas específicas. Esto es así porque las moléculas que se utilizan como moneda de intercambio de energía no poseen todos los enlaces covalentes con la misma energía de enlace. Como por ejemplo el enlace entre oxígeno e hidrógeno es bastante más fuerte que el enlace entre hidrógeno e hidrógeno, u oxígeno y oxígeno. Así, la formación de un enlace O-H a expensas de O-O o H-H liberará energía. Las consideraciones energéticas, por lo tanto, nos indican que una mezcla de oxígeno e hidrógeno de concentración suficiente se transformará en agua.


Otro aspecto interesante es que una molécula posee una energía libre mayor si se une por enlaces covalentes débiles que si lo hace por enlaces fuertes. Esta idea es casi paradójica a primera vista porque significa que cuando más fuerte es el enlace, menor es la cantidad de energía libre que puede ceder. No obstante esto cobra sentido cuando nos damos cuenta de que un átomo que formó un enlace muy fuerte ya perdió una gran cantidad de energía a la hora de formar el enlace, las mejores moléculas combustibles son las que contienen enlaces covalentes débiles y, por tanto, desde el punto de vista termodinámico son inestables.


Por ejemplo la glucosa es una molécula combustible excelente porque hay una gran disminución de energía libre cuando el oxígeno la oxida para generar dióxido de carbono y oxígeno.


La clave para que estas moléculas "ricoenergéticas" sean útiles deben tener otra característica que las hace útiles y es que para que se rompan estos enlaces se necesita mucha energía de activación, y esta energía de activación la van a proporcionar las proteínas, en concreto los enzimas, que rebajan la energía de activación de la reacción haciéndola termodinamicamente favorable. Esto evita que las moléculas rompan el enlace y liberen energía en cualquier situación y lo hagan cuando sea necesario y no espontáneamente.